
Mitotic chromosomes: from the chromosome scaffold model to condensins and physical forces
Kazuhiro Maeshima*, Masa A. Shimazoe, Sachiko Tamura
*Corresponding author
Trends in Genetics Available online 14 September 2026 DOI:10.1016/j.tig.2026.08.005
50日間限定のフリーダウンロードリンク: https://authors.elsevier.com/a/1nmwrcQbJIzT4
(2026/11/2 まで)
ヒトの細胞1個には全長 2 m にも及ぶゲノム DNA が収納されています。この長い DNA は、細胞分裂のたびに正確にコピーされ、2 つの娘細胞へ均等に受け渡されなければなりません。そのために、コピーされた DNA は「分裂期染色体」と呼ばれる太く短い構造へと折り畳まれます。細胞内で DNA はヒストンに巻かれてヌクレオソーム構造を作り、他のタンパク質と一緒に「クロマチン」として存在しています。しかし、細胞分裂期、クロマチンがどのように凝縮し、分裂期染色体が作られるのかは、長い間、遺伝学・細胞生物学の大きな謎でした。
1970 年代には、生化学的にヒストンを取り除いても、染色体の形に似た軸状の構造が残る(染色体スキャフォールド:「足場」)ことから、非ヒストンタンパク質であるこのスキャフォールドが染色体構造を決定しているという「染色体スキャフォールドモデル」がUlrich K. Laemmliらによって提唱されました。その後、このスキャフォールド構造の主要な構成因子として、コンデンシンとトポイソメラーゼ IIα が同定され、分裂期染色体の形づくりに重要な役割を果たすことが明らかになりました。一方で近年の研究から、分裂期染色体は、規則的な 30 nm クロマチン線維を含む階層構造でできているものではなく、不規則で動的な構造として理解されるようになってきました。
今回、情報・システム研究機構 国立遺伝学研究所 ゲノムダイナミクス研究室の前島一博 教授、島添將誠 総研大生(学振特別研究員 DC1)、田村佐知子 テクニカルスタッフは、分裂期染色体形成に関する歴史的モデルと最近の研究成果を総説としてまとめました。本総説では、コンデンシンによる DNA ループ形成、トポイソメラーゼ IIα による DNA の絡まり・解消、さらにヒストンテールの静電的相互作用、リンカーヒストン H1、遊離 Mg2+、分子混雑・枯渇引力といった物理的な力が、分裂期染色体の形成にどのように関わるかを議論しています。
さらに本総説では、分裂期染色体が細胞分裂の時にゼロから作られるのではなく、間期の細胞核内にすでに存在する凝縮したクロマチンドメインを「ビルディングブロック」として利用して作られる可能性を提案しています(図)。これらのブロックが、コンデンシンや物理的な力によって集合することで、分裂期染色体が形成されるという考えです。これは、間期クロマチンと分裂期染色体を連続した構造として理解する新しいモデルです。
本総説は、染色体スキャフォールドモデルから始まった分裂期染色体研究の流れを、コンデンシン、トポイソメラーゼ IIα、そしてクロマチンの物理的性質という観点から整理し、分裂期染色体がどのように作られるのかを考えるための新しい枠組みを提示するものです。
本研究は、日本学術振興会および MEXT KAKENHI(JP24H00061、JP25K24664)、武田科学振興財団、日本学術振興会特別研究員(JP24KJ1161)の支援を受けて実施されました。
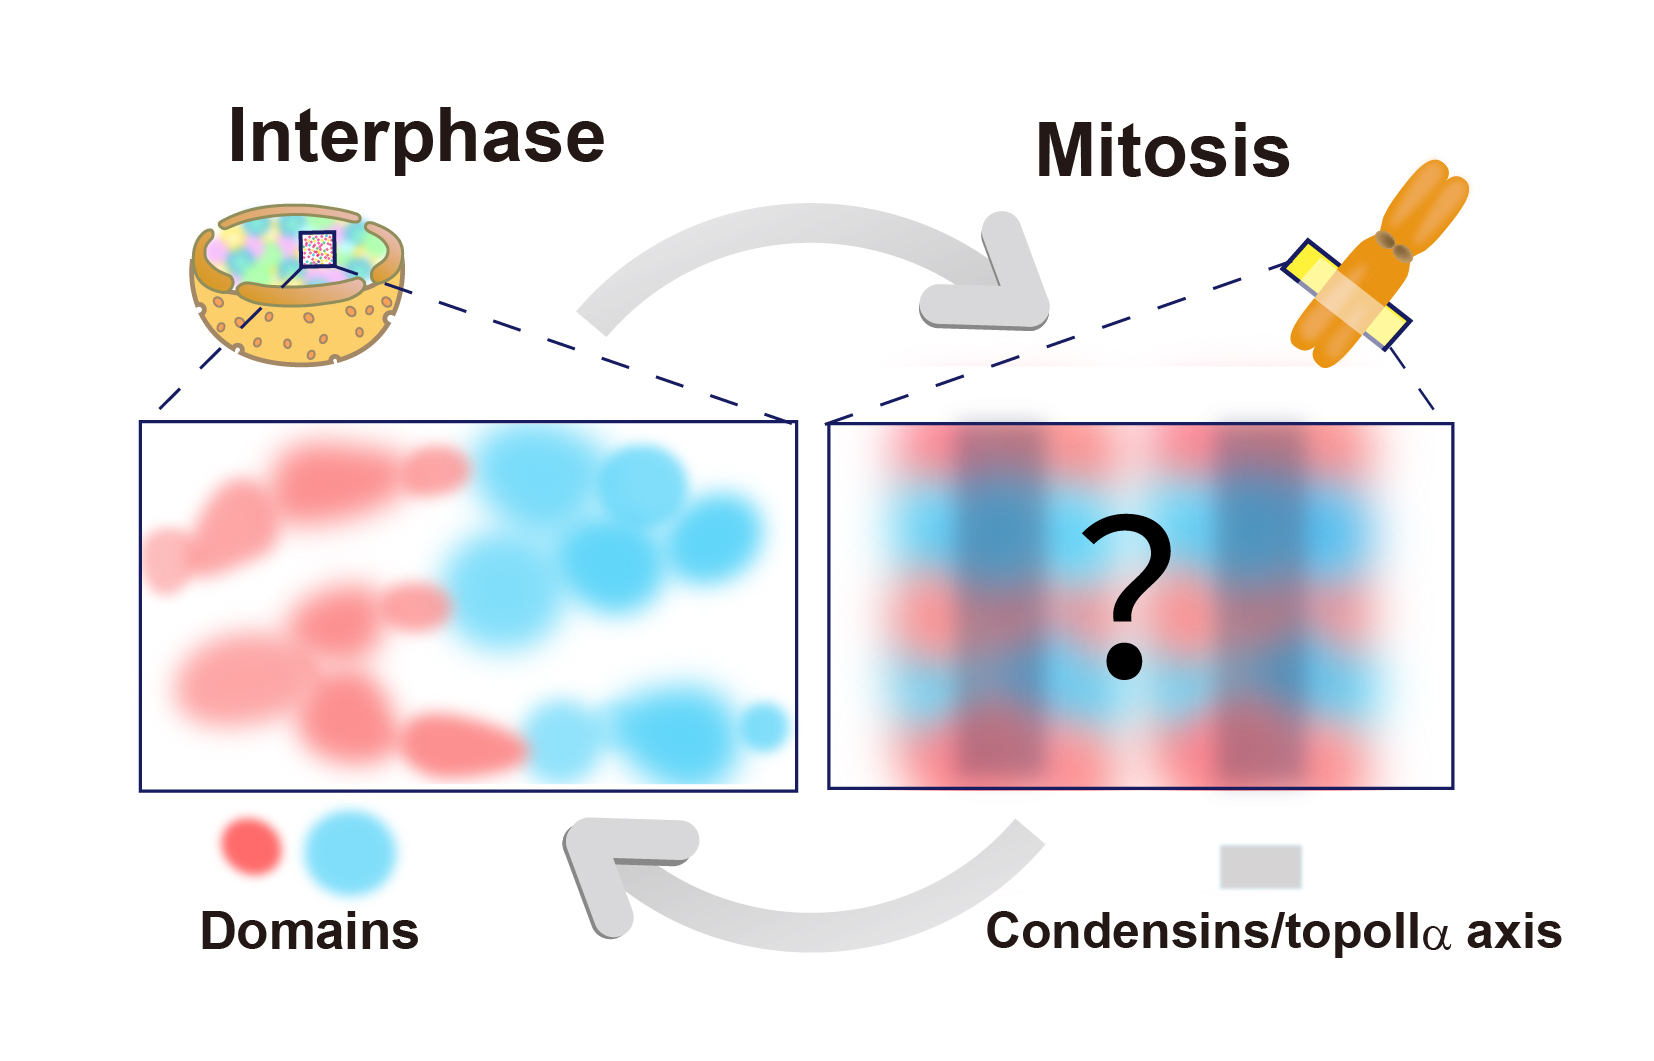
間期の細胞核内では、クロマチンはアクティブなユークロマチン領域(赤)と転写不活性なヘテロクロマチン領域(青)に大別されるが、どちらも、凝縮したクロマチンドメインとして存在している(左)。分裂期には、これらの既存のクロマチンドメインが、コンデンシン、トポイソメラーゼ IIα、静電的相互作用、遊離 Mg2+、枯渇引力などによって集められ、つなぎ合わされ、再編成されることで、分裂期染色体が形成されると考えられる(右)。