
透明な体をもつ小さな魚、ゼブラフィッシュ。光に透けるその体の中では、神経細胞の活動を“生きたまま”観察できる。体の動きを生み出す神経細胞「運動ニューロン」の研究には、ある意味、この魚ほど適したモデルはない。ゼブラフィッシュを用いて、複雑な構造を持つ運動ニューロンの未知の性質を明らかにすることで、難病ALSの原因究明と治療法の開発に挑む。
Profile
1997年 京都大学卒業。2002年 東京大学大学院理学系研究科(博士)。2002~2004年 Cancer Research UK研究員。2004~2019年 遺伝学研究所 研究員を経て助教。2019~2022年 東京医科大学 准教授。2022~2024年遺伝学研究所 特命准教授。2024年より現職。
ゼブラフィッシュを研究の相棒に
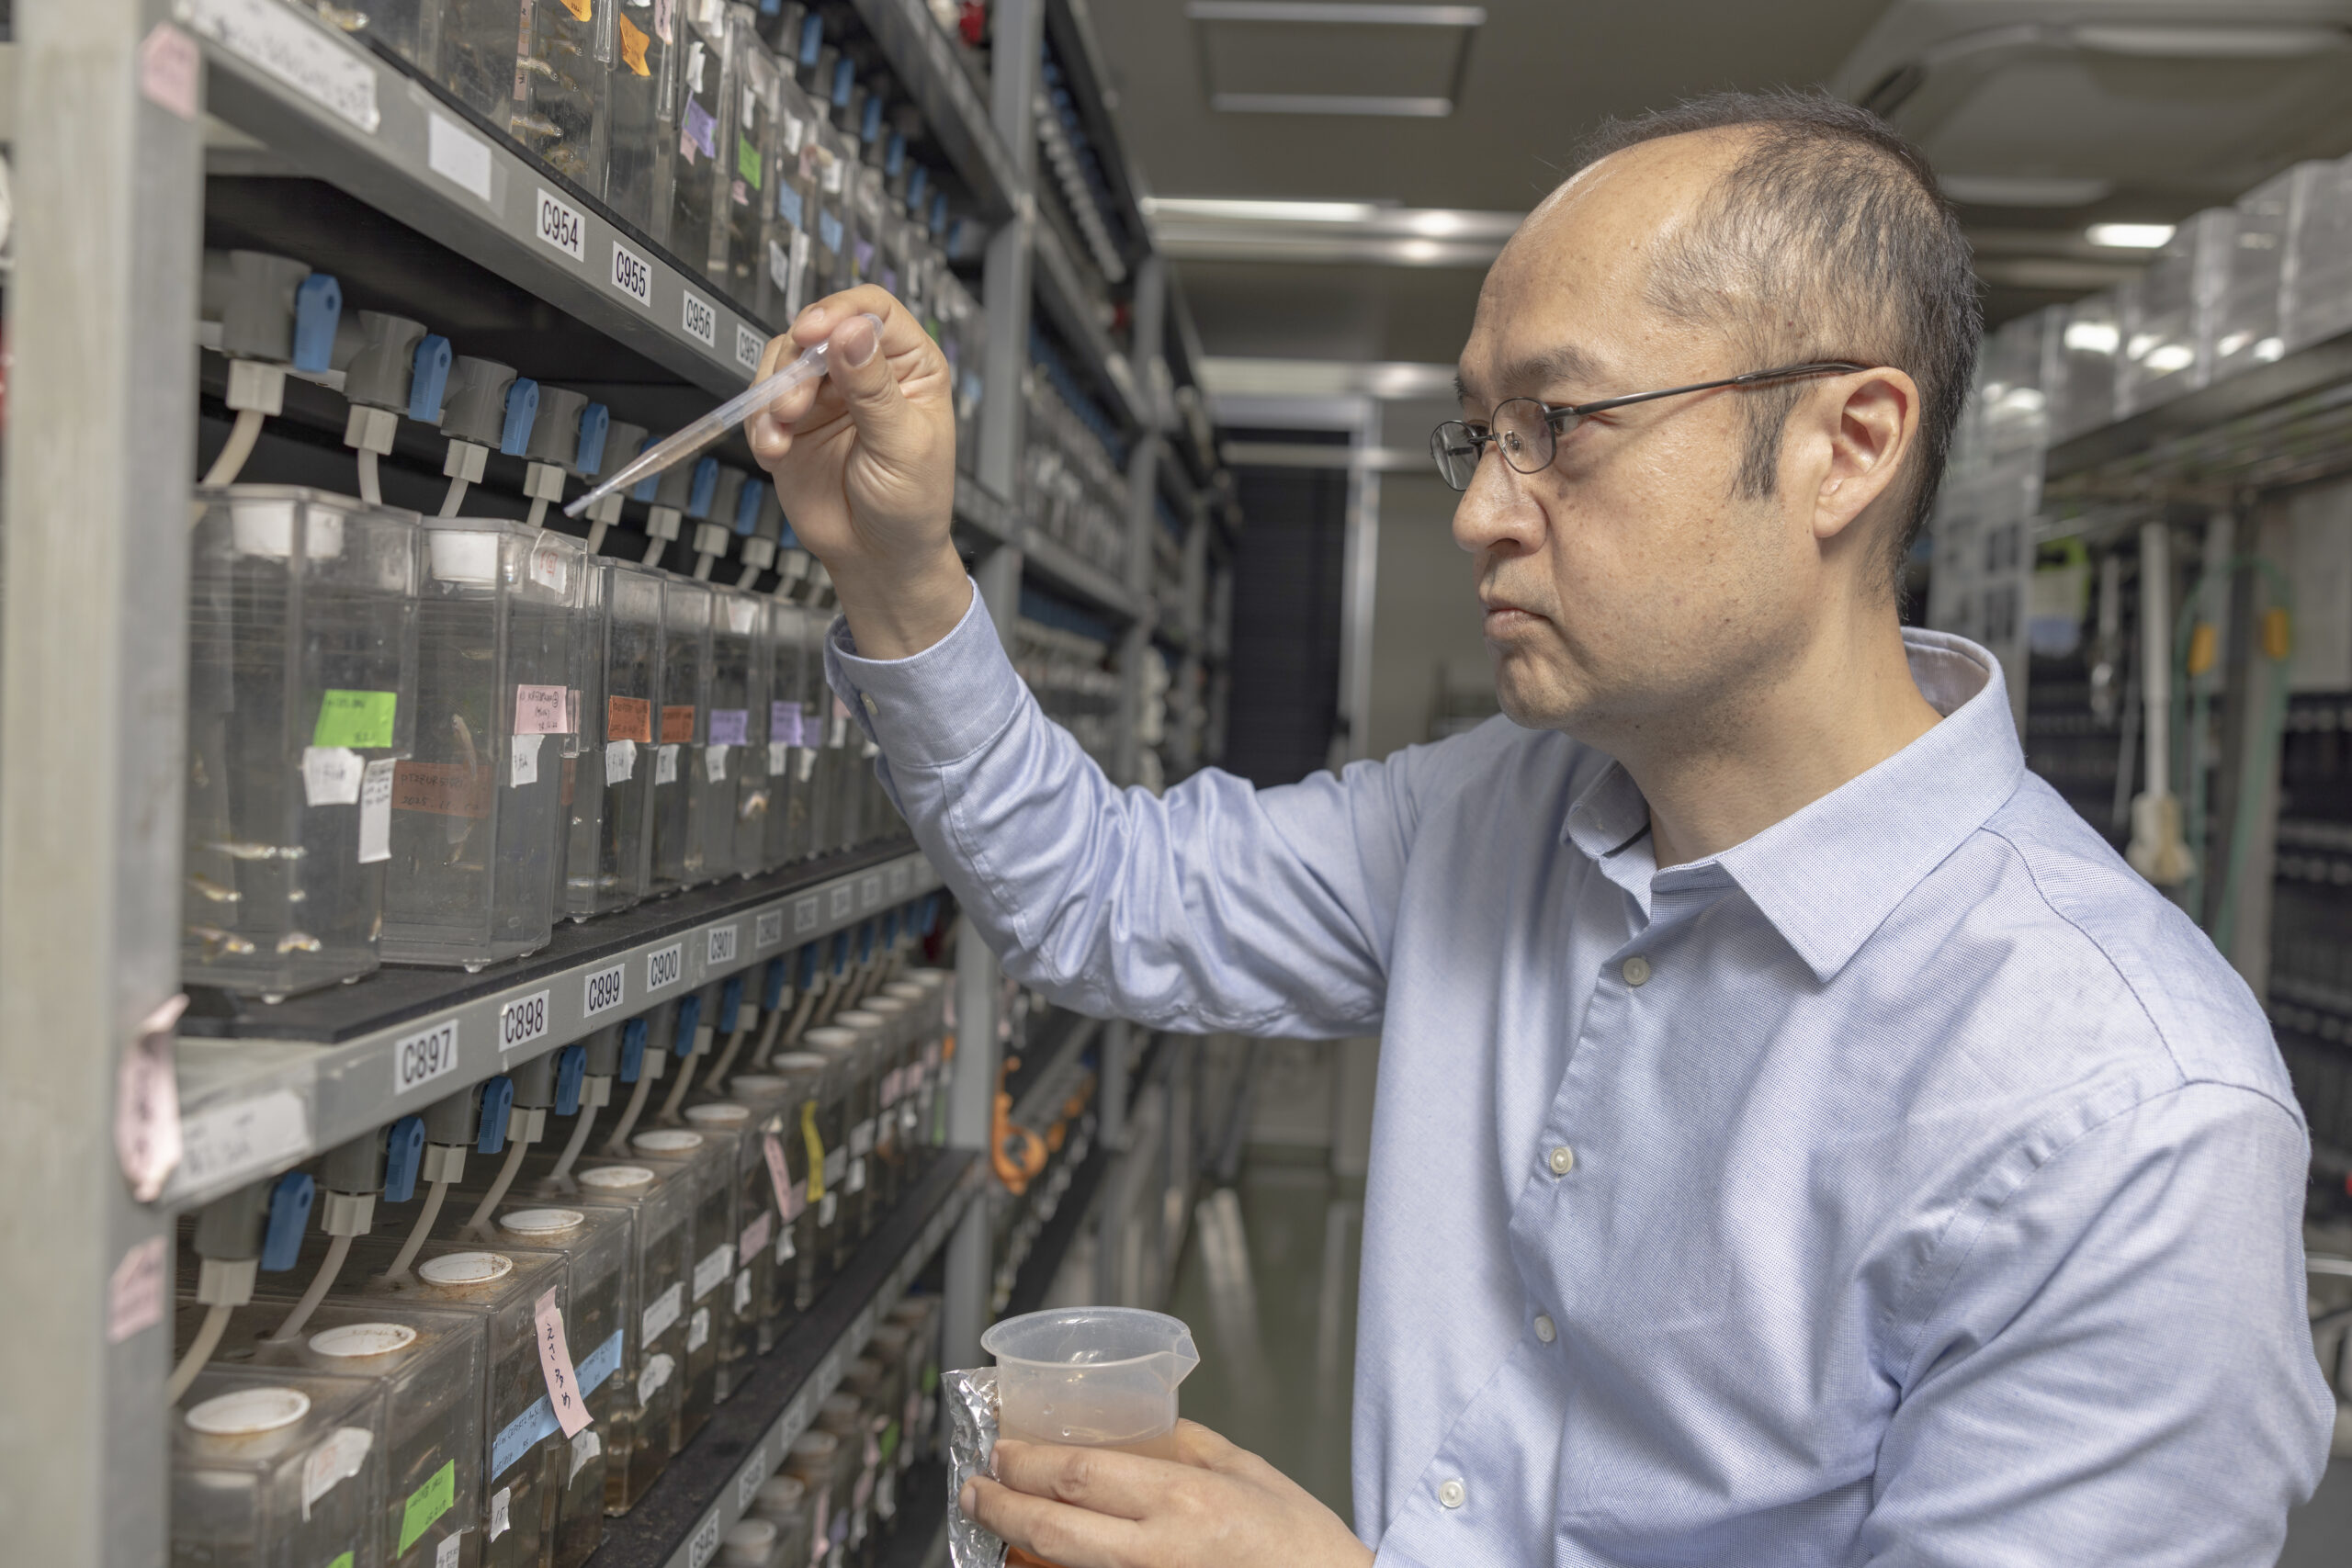
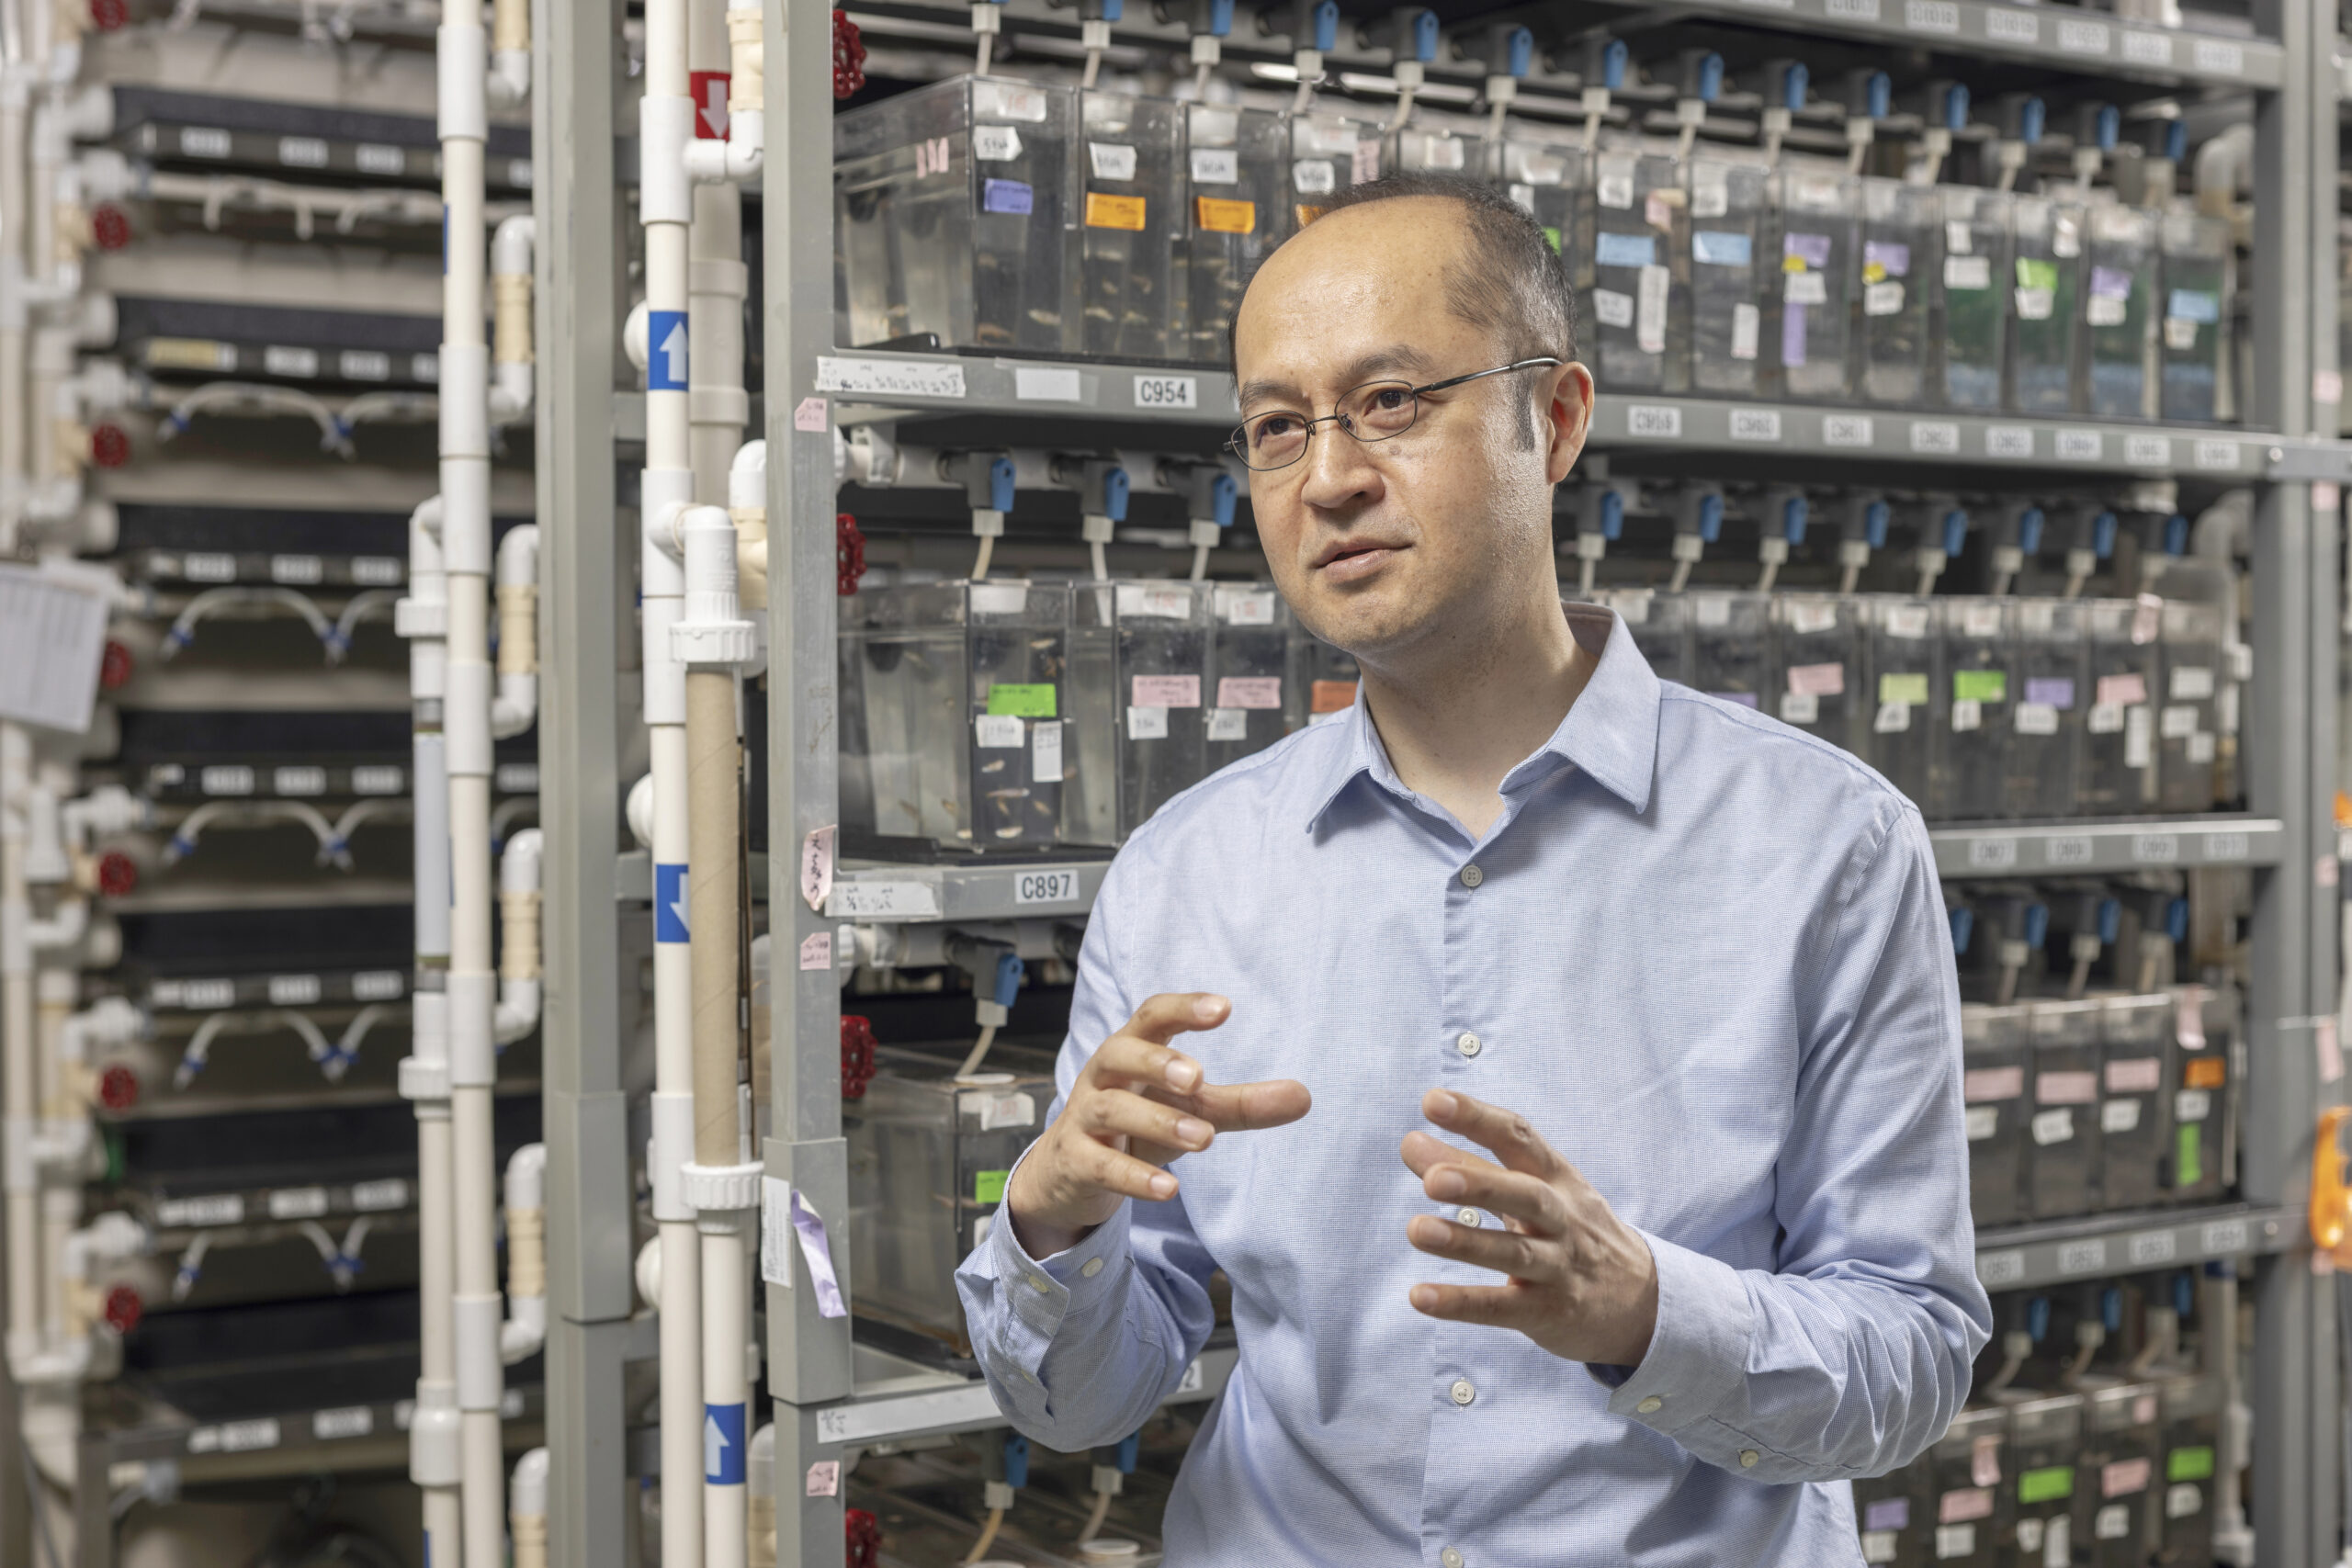
国立遺伝学研究所(遺伝研)には、モデル動物として知られる熱帯魚ゼブラフィッシュの豊富なコレクションが飼育されています。この魚は体長3~4センチほどと小型ですが、生後数週間は体の組織が透明に近いため、臓器や器官で働く細胞の様子を生きたまま直接観察することができます。特に、活動中の神経系を可視化できるという点は、ゼブラフィッシュならではの大きな魅力です。
私は大学院時代から英国留学時代にかけて、酵母菌を使って細胞分裂を研究していました。けれども次第に、「より複雑な多細胞生物の中で、細胞がどのように協調しながら働いているのか」という問題に強い興味を抱くようになり、2004年に思い切ってゼブラフィッシュの研究分野に飛び込みました。
2004年に遺伝研でポスドクとして研究を始めた当初は、単細胞生物である酵母菌と、脊椎動物であるゼブラフィッシュとの違いの大きさにまず戸惑いました。酵母では、一つの細胞の生死がすべてを左右します。しかし高等動物では、分裂で生じた細胞が一つ死んだとしても、個体全体に大きな影響を及ぼさないこともあります。生命のスケールが変わることで、「生きる」ということの質まで変わるのだと感じました。
このように細胞分裂そのものよりも、「細胞たちが協力して働く仕組み」に強い関心を抱くようになったのです。そして出会ったテーマが、運動を司る神経回路の研究です。この出会いがきっかけとなり、私は後にALSという難病の研究へと進むことになりました。
難病ALSの研究へ
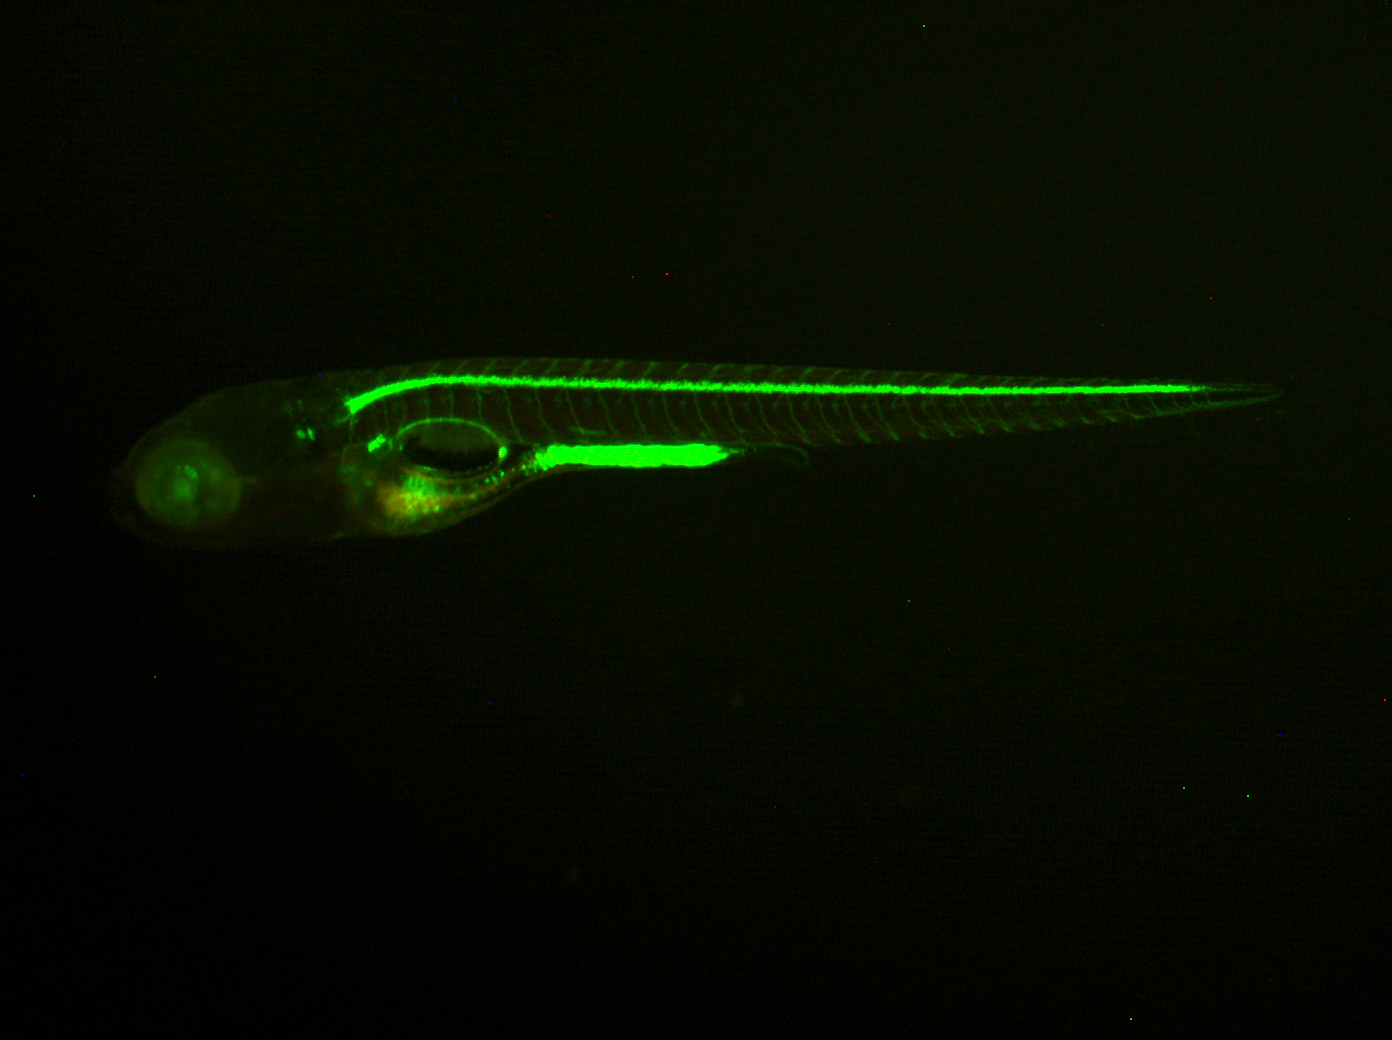
脳から筋肉に運動の指令を伝える神経回路の中心で働く神経細胞が「運動ニューロン」です。ALS(筋萎縮性側索硬化症、きんいしゅくせいそくさくこうかしょう)は、この運動ニューロンが徐々に障害を受けて失われていく病気です。その結果、筋肉を動かすことができなくなり、やがて自分の意思で体を動かせなくなります。
運動ニューロンには二つの種類があります。一つは脳から脊髄へ向かう上位運動ニューロン、もう一つは脊髄から筋肉へ向かう下位運動ニューロンです。上位運動ニューロンは脳から脊髄へ、下位運動ニューロンは脊髄から筋肉へと、それぞれが長い軸索を伸ばして長距離を連結しており、その軸索(ケーブルのような突起)の長さは1メートル近くにも達することがあります。 つまり、脳と筋肉の情報のやりとりは、最短の場合、上位運動ニューロンと下位運動ニューロンというたった二つの神経細胞のリレーで達成できるのです。このような運動ニューロンの機能は、大きく複雑な細胞構造によって支えられているので、生きた細胞の全体像を観察することは、ヒトやマウスでは非常に困難です。ところがゼブラフィッシュでは、体が透明であるという特性を活かして、生きた個体の体の中で運動ニューロンの形や活動を可視化することができます。この点が、ALS研究においてゼブラフィッシュが大きな力を発揮する理由です。
ALSは年間およそ10万人に2人が発症するとされ、日本には約1万人の患者さんがいます。病気には、単一の遺伝子変異を親から受け継ぐことで発症する「家族性ALS」と、家系に患者がいない「孤発性ALS」の二つのタイプがあります。家族性ALSは全体の5~10%程度で、残りの90%以上が孤発性です。残念ながら、どちらのタイプであっても、発症の仕組みや根本的な治療法はいまだ見つかっていません。ALSという病気を理解するためには、運動ニューロンという神経細胞がどのように働き、なぜ障害を受けて失われてしまうのかを理解することが必要です。私は、生きた個体で神経細胞の振る舞いを目で見ることができるゼブラフィッシュなら、この難病の謎に新しい角度から迫ることができるのではないかと考えました。
ユニークな技術でALSの研究を行う
ALSは1869年に初めて記述されて以来、150年以上が経つにもかかわらず、その発症・進行メカニズムの全貌はいまだ明らかになっておらず、根治的な治療法も確立されていません。まさに、神経科学が長年にわたって挑み続けてきた難題の一つです。このようなALSの研究に転機が訪れたのは1993年のことで、家族性ALSの原因遺伝子の一つがSOD1であることが発見されました。さらに2006年には、ALSの患者さんの運動ニューロンに蓄積する凝集体の主要成分がTDP-43というタンパク質であることが明らかにされました。これらの発見によって、ALSに関係する特定の遺伝子やタンパク質が明らかになり始めました。
私がALS研究に関心を持ち始めたのは、その少し後の2010年頃でした。運動ニューロンを生きたまま観察でき、分子生物学的な解析も可能なゼブラフィッシュなら、ALSの分子メカニズムを新しい角度から解き明かせるのではないかと感じたのです。ヒト以外の動物には、ALSと全く同じ症状を示す病気は存在しないかもしれません。しかし、モデル動物を使ってALSの特徴の一部を再現して詳しく解析することは可能です。私は、運動ニューロンでのTDP-43の振る舞いに焦点を当てて研究を始めることにしました。TDP-43は、全身の細胞の核に豊富に存在し、遺伝子からタンパク質を正しく作るためのプロセスに関わっています。ところが、ほとんどすべてのALSでは、運動ニューロンの細胞質にTDP-43が異常に蓄積して凝集するという現象がみられるので、ALSではTDP-43の凝集体が発揮する毒性によって変性が進行するという考えが支配的です。
私は、「このTDP-43凝集体はどのように生じ、そしてその毒性のメカニズムは何か?」という根本的な疑問に取り組むことにしました。ゼブラフィッシュの透明な体の中で運動ニューロンを直接観察できることが、この問いに挑むための大きな力になると感じていました。
運動ニューロンにTDP-43の凝集体を作り出す
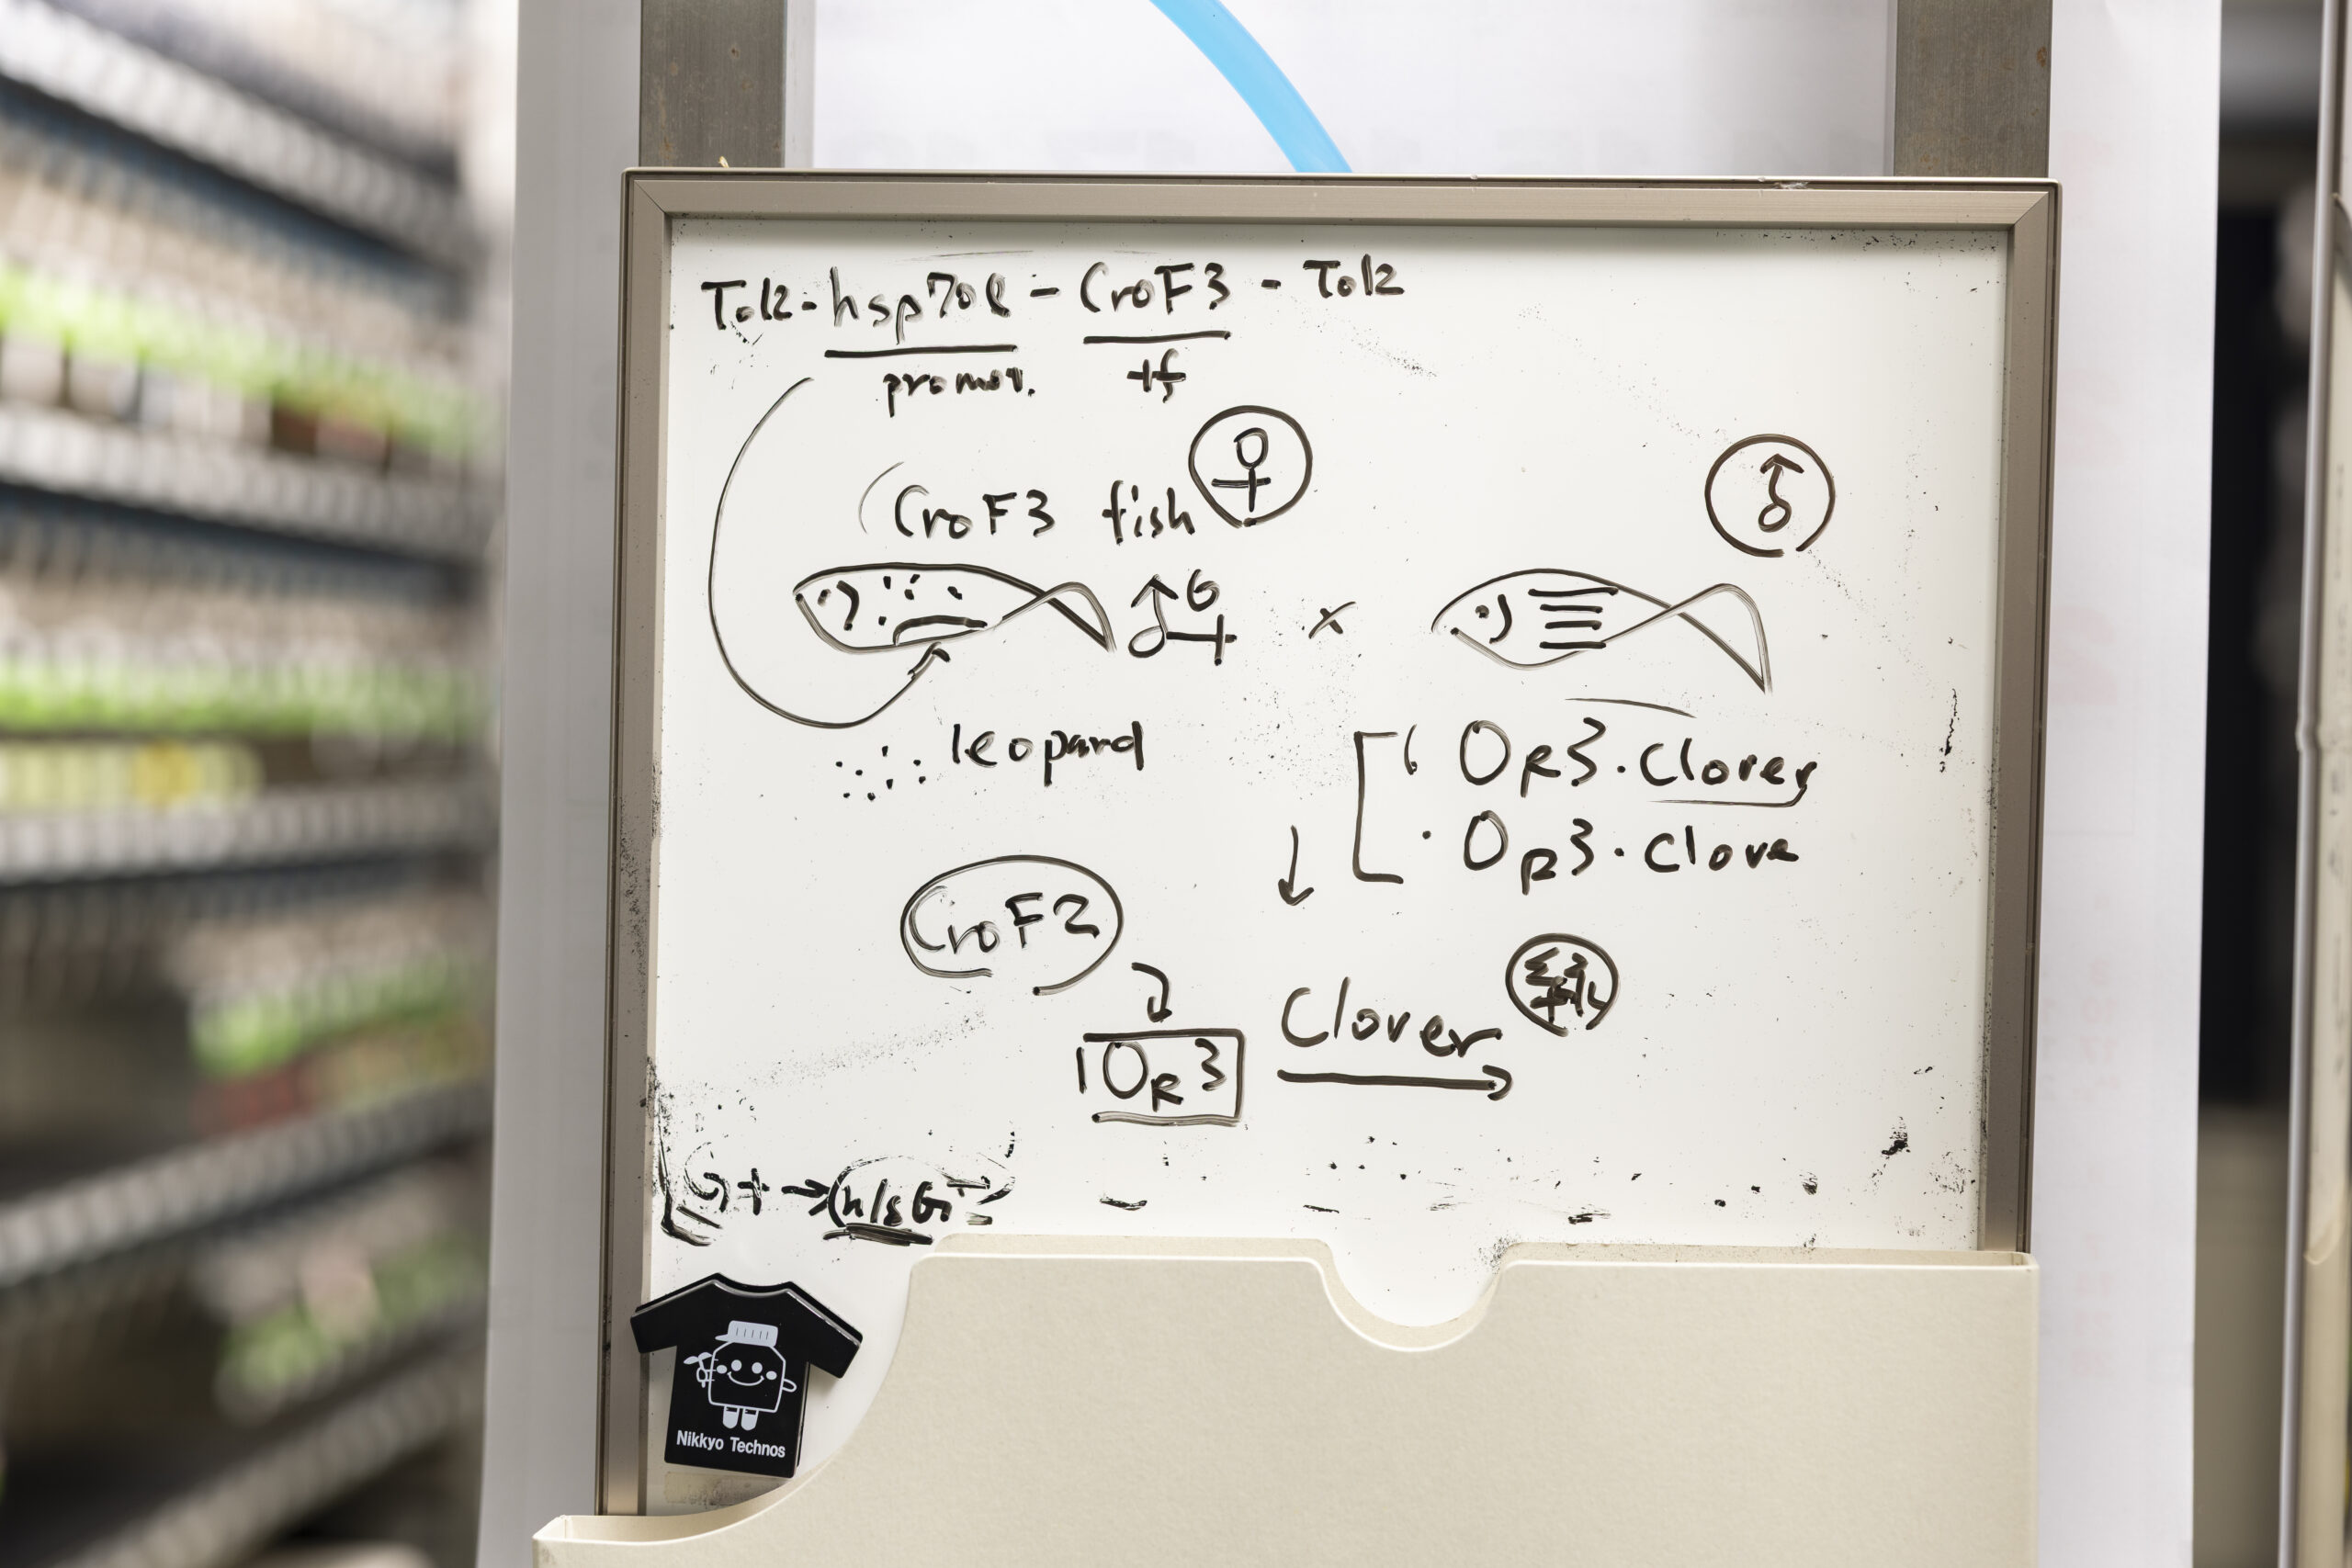
タンパク質という分子は、多くの場合、固有の立体構造をとることが知られていますが、TDP-43には、明確な構造をとらない「天然変性領域」と呼ばれる部分が含まれています。この領域は、相転移(タンパク質の物理的性質が変わる現象)に重要な役割を果たすことが知られています。単純に考えると、TDP-43の濃度を上げて飽和させれば凝集体ができるのではないかと思い、2008年に自ら開発したゼブラフィッシュ用のGal4/UAS遺伝子発現システムを使って、運動ニューロンでTDP-43を過剰に発現させてみました。
ところが、運動ニューロンにはさまざまな障害が現れたものの、TDP-43の凝集体は形成されませんでした。この結果から、「TDP-43の量が増えるだけではALSは起こらないのではないか」と直感的に感じました。
それでは、どのようにしてTDP-43の凝集を再現できるのか? 試行錯誤の時期がしばらく続きました。そんな中、偶然目にした論文が突破口になりました。その論文には、「青い光を吸収すると凝集する植物由来のCRY2タンパク質を、他のタンパク質の天然変性領域に融合すると、青色光の照射でその領域を凝集させることができる」と記されていました。光を用いてタンパク質の性質を制御する光遺伝学の技術を応用した方法で、OptoDroplet法と呼ばれています。
私は「この方法をTDP-43に使えば、ALSで起こる凝集を人工的に再現できるかもしれない」と思い、すぐに試すことにしました。とはいえ、CRY2を融合した光遺伝学型TDP-43をゼブラフィッシュの運動ニューロンで発現させるには、数カ月にわたる実験の積み重ねが必要でした。ようやく光照射実験にこぎつける段となり、青色光を照射してみました。すると光遺伝学型TDP-43が核から細胞質へと拡散し、やがて凝集体を形成していく様子を確認することができました。これは、患者さんの運動ニューロンで観察されるTDP-43の異常とよく似ています。
もちろん、この光遺伝学型TDP-43がALSそのものを再現しているとは言い切れません。しかし、ゼブラフィッシュの運動ニューロンで形成される凝集体が、患者さんの細胞に蓄積する構造物とよく似た性質を持つことがわかったとき、胸が高鳴りました。青い光によって生じるこの変化は、ALSで起こるTDP-43の異常と共通点が多く、私は今もこの研究を継続しています。
TDP-43の凝集は有害なのか
光遺伝学という手法を用いたTDP-43の研究は、TDP-43のこれまで知られていなかった性質を明らかにしつつあります。光遺伝学の優れた点は、現象を光のオンとオフで自在に切り替えられることです。この特徴を活かして、私は光遺伝学型TDP-43を使った新しい実験を行いました。
青色光を照射してTDP-43を核から細胞全体に拡散させたあと、細胞質で凝集する前の段階で光を止めてみる、という実験です。すると、TDP-43は凝集体を形成せずに再び核へ戻っていきました。しかし興味深いことに、この操作を行っただけで、運動ニューロンのその後の成長が阻害されることがわかりました。つまり、TDP-43が凝集しなくても、運動ニューロンはすでに障害を受けているのです。この結果は、「凝集体が毒性を発揮するのか」という問いに直接答えるものではありませんが、「凝集する前の段階で既に有害な変化が起きている」ことを示していました。
この発見は、ALSの根本的な原因を探るうえで重要な示唆を与えます。ALSの病態を理解するためには、単に凝集体そのものを見るだけでなく、その前段階、つまり凝集が始まる前にTDP-43が細胞内でどのような振る舞いをするのかを理解する必要があることを示唆しています。
なぜ、ALSでは体の動きが奪われるのか?
ゼブラフィッシュには、運動ニューロンの形態や細胞内構造を直接観察できるという強みがある、というのは何度も述べました。さらにもう一つの大きな利点として、運動ニューロンだけでなく、その周囲にある他の種類の細胞も同時に観察・解析できるということもあります。これは、動物モデルを用いる研究の本質的な価値の一つです。
意識や五感は保たれたまま、体を動かす機能だけが奪われていく、というALSの最も特徴的な症状の背後には、「なぜ運動ニューロン“だけ”が変性するのか?」という、いまだ解明されていない大きな謎があります。
この謎を解く鍵は、「細胞の違い」にあります。ヒトとゼブラフィッシュは同じ脊椎動物の仲間であり、運動ニューロンや感覚ニューロンなど、神経系を構成する細胞の種類が非常によく似ています。したがって、ALSでの「変性のしやすさ」を決める細胞の違いを、ゼブラフィッシュを使って解き明かせるのではないかと考えています。
私たちが注目している“細胞の違い”は大きく二つあります。一つ目は、運動を制御する運動ニューロンと、五感を担う感覚ニューロンという、神経細胞の種類の違いです。ALSでは五感が保たれることから、感覚ニューロンは障害されにくいことがわかっています。二つ目は、運動ニューロンの中でも、大きな体の動きを生み出す大型の運動ニューロンと、繊細な体の動きを制御する小型の運動ニューロンとの違いです。ALSでは特に大型の運動ニューロンが変性しやすいことが報告されています。ゼブラフィッシュは、このような神経細胞の違いを同一個体の中で比較できるため、非常に優れたモデルになります。私たちの最新の論文では、この「ALSでの変性しやすさを決める細胞の違い」に焦点を当てました。
この研究は、もともと別のテーマの研究を進めていたときに、偶然の発見から発展したものです。私は、不要になったタンパク質や細胞内の器官を分解する仕組みであるオートファジーの活性を、運動ニューロンで可視化するゼブラフィッシュ系統を作っていました。すると、脊髄の中に、オートファジー活性が特に高い細胞を見つけたのです。調べてみると、それが大型の運動ニューロンでした。さらに解析を進めると、大型の運動ニューロンでは、正常に折りたたまれていないタンパク質が多く蓄積し、それを除去するためにオートファジーやプロテアソームといった分解経路が非常に活発であることがわかりました。ALSに関連する遺伝子変異(TDP-43変異)を導入すると、その分解経路の活性はさらに上昇しました。一方で、人工的に分解経路を抑制すると、筋肉との接続に必要な神経軸索の形成が阻害されてしまいました。すなわち、大型の運動ニューロンで高まっている分解活動は、細胞を守るための防御反応と考えられます。
これらの研究から、ALSにおいて神経細胞の変性しやすさ(脆弱性)を決める“細胞の違い”とは、分解経路が普段からどれほどの負担を抱えているかに関係しているのではないかと予想しています。分解されるべきタンパク質が過剰に蓄積すれば、細胞は負荷を感じ、その負荷を軽減するために分解活性を上げる。しかし、その努力にも限界がある。こうした「分解負担の大きさ」が、神経細胞ごとの変性しやすさの違いを生んでいるのかもしれません。
実際、体長わずか数ミリのゼブラフィッシュの仔魚でも、運動ニューロンにおけるこの負担を検出できました。ヒトのように体が大きく、1メートル近い軸索をもつ運動ニューロンでは、その負担はさらに増すでしょう。その負担に耐えきれず多くの運動ニューロンが失われた結果が、最終的に「体の動きが奪われる」というALSの症状として現れてくる可能性があります。 このように、複数の種類の細胞を同じ個体で比較できるというゼブラフィッシュの特徴は、ALSの未知の原因を探るうえで極めて有効な手段だと確信しています。
一緒にALSの研究に取り組みませんか?
ALSの研究は、医学・神経科学・分子生物学・工学など、さまざまな分野の研究者が協力して取り組む挑戦的な分野です。一つのアプローチで道が拓けることはまれであり、異なる視点を重ね合わせながら、研究を前進させていく必要があります。私はその中で、運動ニューロンという神経細胞の未知の性質を明らかにし、そこからALSの原因や発症メカニズムの解明に迫り、運動ニューロンの保護法(すなわち、治療法)を開発する道筋を見いだしたいと考えています。
ALSでは、何が最初に細胞を傷つけ、どのようにして病気が広がっていくのか。その全貌はいまだ明らかではありません。けれども、運動ニューロンの“本来の性質”を丁寧に掘り下げていくことで、「ALSの入り口」、すなわち原因究明への糸口が見えてくるのではないかと信じています。思いもよらない発見や偶然のひらめきが、科学の流れを大きく変えることがあります。そうした瞬間に出会えるのも、研究の醍醐味だと思います。
私がALS研究を始めた10年ほど前は、研究はものすごいスピードで進んではいるものの、延命効果のある治療法はほとんどなく、「ALSという病気を理解し、治せる日が来るのだろうか」と感じることもありました。しかしこの10年の間に、いくつかの治療法が科学的根拠をもって開発され、一部のALSでは明確な効果が報告されるようになりました。病気の報告から150年を経た今、ALS研究は新しい段階に入りつつあります。このようなALS研究の進展を目の当たりにして、「研究が確かに人を救っている」と実感し、胸が震える瞬間もありました。
高校生、大学生の皆さん、科学に興味があるのならば、どうか科学を信じて研究に参加してください。研究には時間も努力も必要ですが、きっと、人それぞれに素晴らしい経験が待っています。もしALSという難病に挑戦してみたいと思うなら、一緒に研究しませんか。人生のほんの数年間でも構いません。あなたのその数年が、病気の謎を解く一歩となり、未来の治療法を生み出すきっかけになるかもしれません。
聞き手:サイエンスライター 藤川 良子
2025 年8月